Каннабис является одним из наиболее химически специфичных психоактивных веществ, широко используемых человеком. В отличие от алкоголя, который воздействует на множество нейромедиаторных систем, или кофеина, действующего через сравнительно узкий аденозиновый путь, ТГК взаимодействует с рецепторной системой, глубоко встроенной в эмоциональную и регуляторную архитектуру мозга.
Эта специфичность имеет принципиальное значение. Она означает, что тревожность и паранойя, вызванные каннабисом, не являются случайными эффектами, не свидетельствуют о личной уязвимости и не представляют собой фармакологическую загадку. Это предсказуемые последствия взаимодействия определенной молекулы с определенными рецепторами в определенных областях мозга — и как только эта цепочка событий становится понятной, тревожная реакция перестает выглядеть как аномалия и начинает восприниматься как ожидаемый результат с точки зрения биологии.
Дельта-9-ТГК как фармакологический объект
Дельта-9-тетрагидроканнабинол, основной психоактивный компонент каннабиса, в фармакологии классифицируется как частичный агонист каннабиноидных рецепторов типа 1 (CB1). Эта классификация имеет большее значение, чем может показаться на первый взгляд. Частичный агонист связывается с рецептором и активирует его, но делает это иначе, чем эндогенные лиганды организма — анандамид и 2-AG — взаимодействуют с тем же участком. Активация оказывается неполной, динамика передачи сигнала отличается, и последующие эффекты не воспроизводят естественную работу эндоканнабиноидной системы с высокой точностью.
Рецепторы CB1 являются одними из наиболее распространенных рецепторов, сопряженных с G-белками, в мозге млекопитающих, однако их распределение далеко не равномерно. Они представлены с особенно высокой плотностью в префронтальной коре, гиппокампе, базальных ганглиях, мозжечке и, что критически важно для данного обсуждения, в миндалевидном теле. Каждая из этих областей обладает собственной функциональной специализацией, и фармакологический профиль ТГК в каждой из них частично определяется плотностью рецепторов, а частично — функциями самой области в нормальных условиях.
Поведение ТГК как частичного агониста также делает его эффекты чувствительными к концентрации. При низкой степени занятости рецепторов он может вызывать мягкие, модулирующие эффекты. При более высокой степени занятости он начинает подавлять собственную сигнальную активность эндоканнабиноидной системы, действуя менее точно и более дестабилизирующе, что в некоторых областях приводит к клинически значимым последствиям. Понимание этой зависимости от контекста и дозы является необходимым до рассмотрения конкретных структур мозга — поскольку эффекты ТГК не являются бинарными. Они масштабируются, и те области, которые наиболее связаны с тревожностью, как раз являются теми, где изменение масштаба дает наиболее выраженные функциональные последствия.
Функции миндалевидного тела и влияние на него ТГК
Миндалевидное тело не является пассивным регистратором эмоций. Это активная система оценки угроз в режиме реального времени. У млекопитающих его основная функция заключается в сопоставлении поступающей сенсорной и когнитивной информации с постоянным вопросом: представляет ли это опасность? Когда система обнаруживает стимул, соответствующий критериям угрозы — будь то внезапный звук, неоднозначный социальный сигнал или изменение внутреннего состояния — она инициирует скоординированную реакцию, включающую страх, повышенную бдительность и физиологическое возбуждение, связанное с защитным поведением.
В нормальных условиях эндоканнабиноидная система выполняет модулирующую роль в этом процессе. Эндогенные каннабиноиды помогают калибровать порог реакции миндалевидного тела, поддерживая пропорциональность восприятия угрозы и предотвращая формирование реакции страха на нейтральные или безвредные стимулы. Это не второстепенная функция — это один из механизмов поддержания эмоционального равновесия мозга.
Когда ТГК связывается с рецепторами CB1 в миндалевидном теле, эта калибровка нарушается. Вместо точной, чувствительной к обратной связи регуляции, которую обеспечивают эндоканнабиноиды, ТГК вызывает более грубую и менее адаптивную активацию рецепторов. Порог обнаружения угрозы снижается. Стимулы, которые в обычных условиях воспринимались бы как нейтральные или неопределенные, начинают интерпретироваться как потенциально опасные. Внутренний эмоциональный сигнал смещается в сторону бдительности и страха, а когнитивная интерпретация этого состояния — попытка мозга объяснить возникающие ощущения — формирует характерные проявления тревожности, вызванной каннабисом: учащенное сердцебиение, ощущение уязвимости, неопределенное чувство, что что-то не так (Bhattacharyya и соавт., 2009).
Это не метафорическое описание. Нейровизуализационные исследования зафиксировали изменения активности миндалевидного тела под воздействием ТГК, а фармакология рецепторов хорошо изучена. Возникающая реакция страха не является психологической проекцией на нейтральное состояние. Это измеряемый результат работы системы обнаружения угроз, выведенной за пределы ее нормального функционального диапазона.
Гормональный аспект: кортизол и стрессовая ось
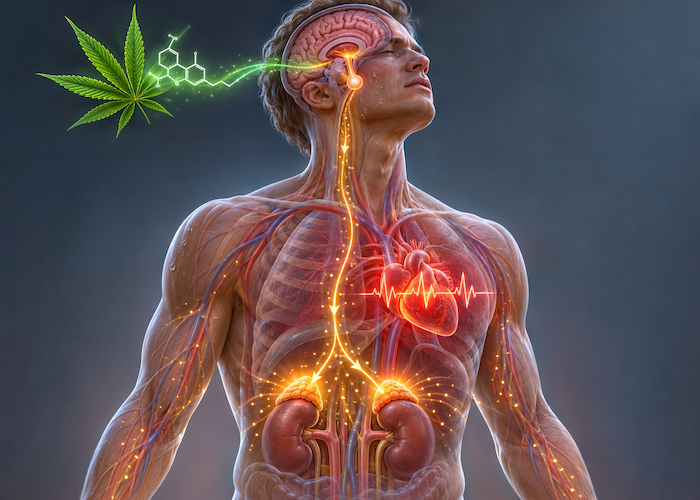
Миндалевидное тело — не единственная система, имеющая значение в данном контексте. Параллельно с нейронными цепями обработки страха в мозге функционирует гормональная система стрессовой реакции организма, и ТГК также вмешивается в ее работу.
Гипоталамо-гипофизарно-надпочечниковая ось — ГГН-ось — является центральным механизмом, с помощью которого организм формирует и регулирует физиологическую реакцию на стресс. Когда воспринимается угроза, гипоталамус подает сигнал гипофизу, который, в свою очередь, активирует надпочечники для высвобождения кортизола. Далее кортизол запускает каскад физиологических изменений, которые обычно ассоциируются со стрессом: учащение сердечного ритма, повышение бдительности, изменение метаболизма и субъективное ощущение давления.
Эндоканнабиноидная система не является второстепенной в этом процессе. Рецепторы CB1 экспрессируются в гипоталамусе и по всей ГГН-оси, а эндоканнабиноидная сигнализация участвует в регуляции времени начала, интенсивности и завершения выброса кортизола. При нормальном функционировании этой системы стрессовая реакция остается соразмерной и самозатухающей. ТГК нарушает эту регуляторную функцию. Связываясь с рецепторами CB1 и активируя их иным фармакологическим способом, он вмешивается в механизмы обратной связи, которые обычно снижают уровень кортизола, что может приводить к поддержанию повышенной концентрации гормона стресса даже при отсутствии внешнего стрессора (Cota и соавт., 2007).
В результате организм входит в реальное, биохимически измеряемое состояние стресса — не субъективно воспринимаемое, а объективно существующее гормональное состояние, которое затем интерпретируется мозгом. Когда при этом миндалевидное тело становится гиперчувствительным к сигналам угрозы, а в кровотоке циркулирует повышенный уровень кортизола, субъективное переживание тревоги многократно усиливается. Физические симптомы кажутся убедительными, поскольку в гормональном смысле они действительно реальны. Эта физиологическая реальность затем возвращается в когнитивную сферу, где интерпретируется как подтверждение того, что происходит нечто угрожающее — даже если это не так.
Доза как структурный фактор
Ни один из описанных механизмов не является абсолютным. То, вызовет ли ТГК тревожность у конкретного человека в конкретных условиях, определяется не только самим фактом его связывания с рецепторами CB1 в миндалевидном теле и нарушения регуляции ГГН-оси. Существенную роль играет количество ТГК, и связь между дозой и развитием тревожности является одной из наиболее контринтуитивных особенностей фармакологии каннабиса.
При низких дозах ТГК может, напротив, снижать уровень тревоги. Это не парадокс, а следствие фармакологии частичного агониста: при низкой степени занятости рецепторов его модулирующее воздействие на эндоканнабиноидную систему может проявляться как мягкий успокаивающий эффект, что соответствует опыту многих пользователей. Тревожные эффекты начинают проявляться по мере увеличения дозы, и делают это достаточно закономерно. Более высокие дозы устойчиво ассоциируются с усилением тревоги и паранойи — это двухфазный характер дозозависимой реакции, хорошо задокументированный в контролируемых исследованиях (Crippa и соавт., 2009).
Практическое значение этого факта существенно. Доза, вызывающая расслабление у регулярного пользователя, может находиться значительно ниже порога, при котором у нерегулярного пользователя уже начинают проявляться тревожные эффекты. При этом сам порог не является фиксированным: он изменяется в зависимости от толерантности, индивидуальной плотности рецепторов CB1 и базового состояния эндоканнабиноидной системы. Это означает, что одна и та же номинальная доза может занимать совершенно разные позиции на кривой «доза–эффект» в зависимости от человека и контекста.
Данные рандомизированных контролируемых исследований значительно усиливают это понимание. При внутривенном введении ТГК здоровым добровольцам без психиатрического анамнеза наблюдалось значительное и измеряемое увеличение уровня паранойи. Этот эффект опосредовался тремя выявленными механизмами: усилением негативного аффекта, появлением аномальных перцептивных переживаний и снижением когнитивной ясности. Важно, что ни у одного из участников не было предрасположенности к тревожности или паранойе — наблюдаемая реакция являлась прямым фармакологическим результатом действия ТГК в достаточной дозе у изначально здоровых людей (Freeman и соавт., 2015). Этот результат исключает возможность объяснять индуцированную каннабисом паранойю исключительно индивидуальной уязвимостью. При определенной дозе и воздействии на соответствующие области мозга биология сама формирует этот эффект.
Соотношение ТГК и КБД и химия риска
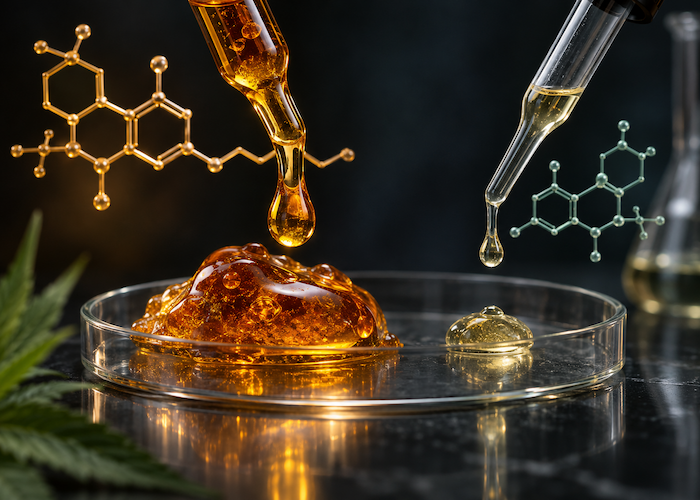
Доза — не единственный химический фактор, определяющий этот профиль риска. Состав самого каннабиса — в частности соотношение тетрагидроканнабинола (ТГК) и каннабидиола (КБД) — является вторым ключевым параметром, от которого зависит, приведет ли конкретное воздействие к развитию тревожности.
КБД не является фармакологически нейтральным соединением. Он взаимодействует с несколькими рецепторными системами, включая те, которые участвуют в регуляции тревожности, и его влияние на тревожные эффекты ТГК носит антагонистический характер в клинически значимом смысле. При совместном присутствии с ТГК КБД ослабляет тревожность и паранойю, которые способен вызывать ТГК в изоляции. Механизм этого эффекта до конца не установлен, однако КБД, по-видимому, модулирует сигнальную активность рецепторов CB1 таким образом, что компенсирует более дестабилизирующее воздействие ТГК, а также проявляет собственную анксиолитическую активность через другие биохимические пути (Zuardi и соавт., 2012).
Исторически растения каннабиса содержали как ТГК, так и КБД в количествах, обеспечивающих определенную естественную буферизацию эффектов. Однако селекционное разведение, ориентированное на повышение психоактивной силы в последние десятилетия, существенно сместило этот баланс. Многие современные коммерческие и нелегально выращенные продукты содержат очень высокие концентрации ТГК при практически полном отсутствии КБД — такой химический профиль устраняет смягчающий эффект и максимизирует риск развития тревожности при любой заданной дозе.
Это не культурное наблюдение и не риторический аргумент в рамках регулирования. Это прямое следствие фармакологии: удаление одного соединения, которое модифицирует действие другого, изменяет итоговый эффект. Продукт с высоким соотношением ТГК к КБД по своей химической природе с большей вероятностью вызывает тревожность и паранойю, чем продукт, в котором КБД присутствует в значимых концентрациях. Этот риск не является гипотетическим — он напрямую вытекает из описанных ранее механизмов.
Предсказуемая биология, а не случайное невезение
В совокупности эти механизмы формируют целостную картину. ТГК, являясь частичным агонистом рецепторов CB1, сконцентрированных в миндалевидном теле, нарушает нормальную калибровку системы обнаружения угроз в мозге. Одновременно он вмешивается в регуляцию гипоталамо-гипофизарно-надпочечниковой оси, повышая уровень кортизола и формируя реальное физиологическое состояние стресса, которое мозг воспринимает и интерпретирует как соответствующее угрозе. Интенсивность обоих процессов зависит от дозы, что объясняет двухфазный характер реакции: при низких дозах эффект может оставаться ниже порога тревожности, тогда как при более высоких дозах он становится выраженным. Наконец, наличие или отсутствие КБД определяет, существует ли фармакологический буфер, способный смягчить эту реакцию.
В этом нет ничего загадочного. Для возникновения этих эффектов не требуется особая предрасположенность, специфическое психическое состояние или определенная обстановка — хотя все эти факторы могут в некоторой степени модифицировать субъективный опыт. При достаточной дозе и при использовании каннабиса с высоким содержанием ТГК и низким содержанием КБД биологические механизмы приводят к тревожности и паранойе, поскольку именно так функционируют задействованные нейронные и гормональные системы в данных условиях.
Понимание этого важно не для того, чтобы отговаривать от употребления каннабиса, а для точности интерпретации. Тревожность, вызванная каннабисом, не является индивидуальной особенностью, которую можно игнорировать, и не сводится к личной слабости, требующей самостоятельного контроля. Это механистически объяснимый, дозозависимый и химически модифицируемый результат работы конкретных рецепторных систем в рамках определенных нейронных и гормональных процессов. Научные данные по этому вопросу достаточно однозначны уже некоторое время. Вопрос заключается лишь в том, получает ли это объяснение должное внимание.
Источники:
- Bhattacharyya, S., Fusar-Poli, P., Borgwardt, S., Martin-Santos, R., Nosarti, C., O'Carroll, C., et al. (2009). Modulation of mediotemporal and ventrostriatal function in humans by Δ9-tetrahydrocannabinol: A neural basis for the effects of cannabis on learning and psychosis. Archives of General Psychiatry, 66(4), 442–451.
- Cota, D., Steiner, M. A., Marsicano, G., Cervino, C., Herman, J. P., Grübl, A., et al. (2007). Requirement of cannabinoid receptor type 1 for the basal modulation of hypothalamic-pituitary-adrenal axis function. Endocrinology, 148(4), 1574–1581.
- Crippa, J. A., Zuardi, A. W., Martín-Santos, R., Bhattacharyya, S., Atakan, Z., McGuire, P., & Fusar-Poli, P. (2009). Cannabis and anxiety: A critical review of the evidence. Human Psychopharmacology: Clinical and Experimental, 24(7), 515–523.
- Freeman, D., Dunn, G., Murray, R. M., Evans, N., Lister, R., Antley, A., et al. (2015). How cannabis causes paranoia: Using the intravenous administration of Δ9-tetrahydrocannabinol (THC) to identify key cognitive mechanisms leading to paranoia. Schizophrenia Bulletin, 41(2), 391–399.
- Zuardi, A. W., Shirakawa, I., Finkelfarb, E., & Karniol, I. G. (2012). Action of cannabidiol on the anxiety and other effects produced by delta 9-THC in normal subjects. Psychopharmacology, 76(3), 245–250.



Будьте первым!